L'informazione molecolare non si conserva automaticamente. Replicazione, mutazione, accoppiamento catalitico e vantaggio selettivo sono proprietà specificate di particolari sistemi chimici, non attributi globali di materia arbitraria. Una volta che esiste un sistema replicante, la sua capacità di conservare una sequenza significativa dipende da un equilibrio quantitativo: gli errori introdotti durante la copiatura devono essere tollerati dal vantaggio selettivo di cui gode la sequenza significativa rispetto alla sua nube di mutanti.
Per una sequenza master di lunghezza vₘ, fedeltà media per simbolo q̄ₘ e vantaggio selettivo σₘ rispetto al mutante medio, la condizione di mantenimento è
q̄ₘvₘ · σₘ > 1
Qui q̄ₘvₘ è la probabilità che un'intera copia sia priva di errori, e diminuisce esponenzialmente al crescere di vₘ. Il fattore σₘ è il margine selettivo che tollera le copie errate che vengono comunque conservate. La soglia d'errore è il confine q̄ₘvₘ · σₘ = 1.
Interpretare la relazione della soglia
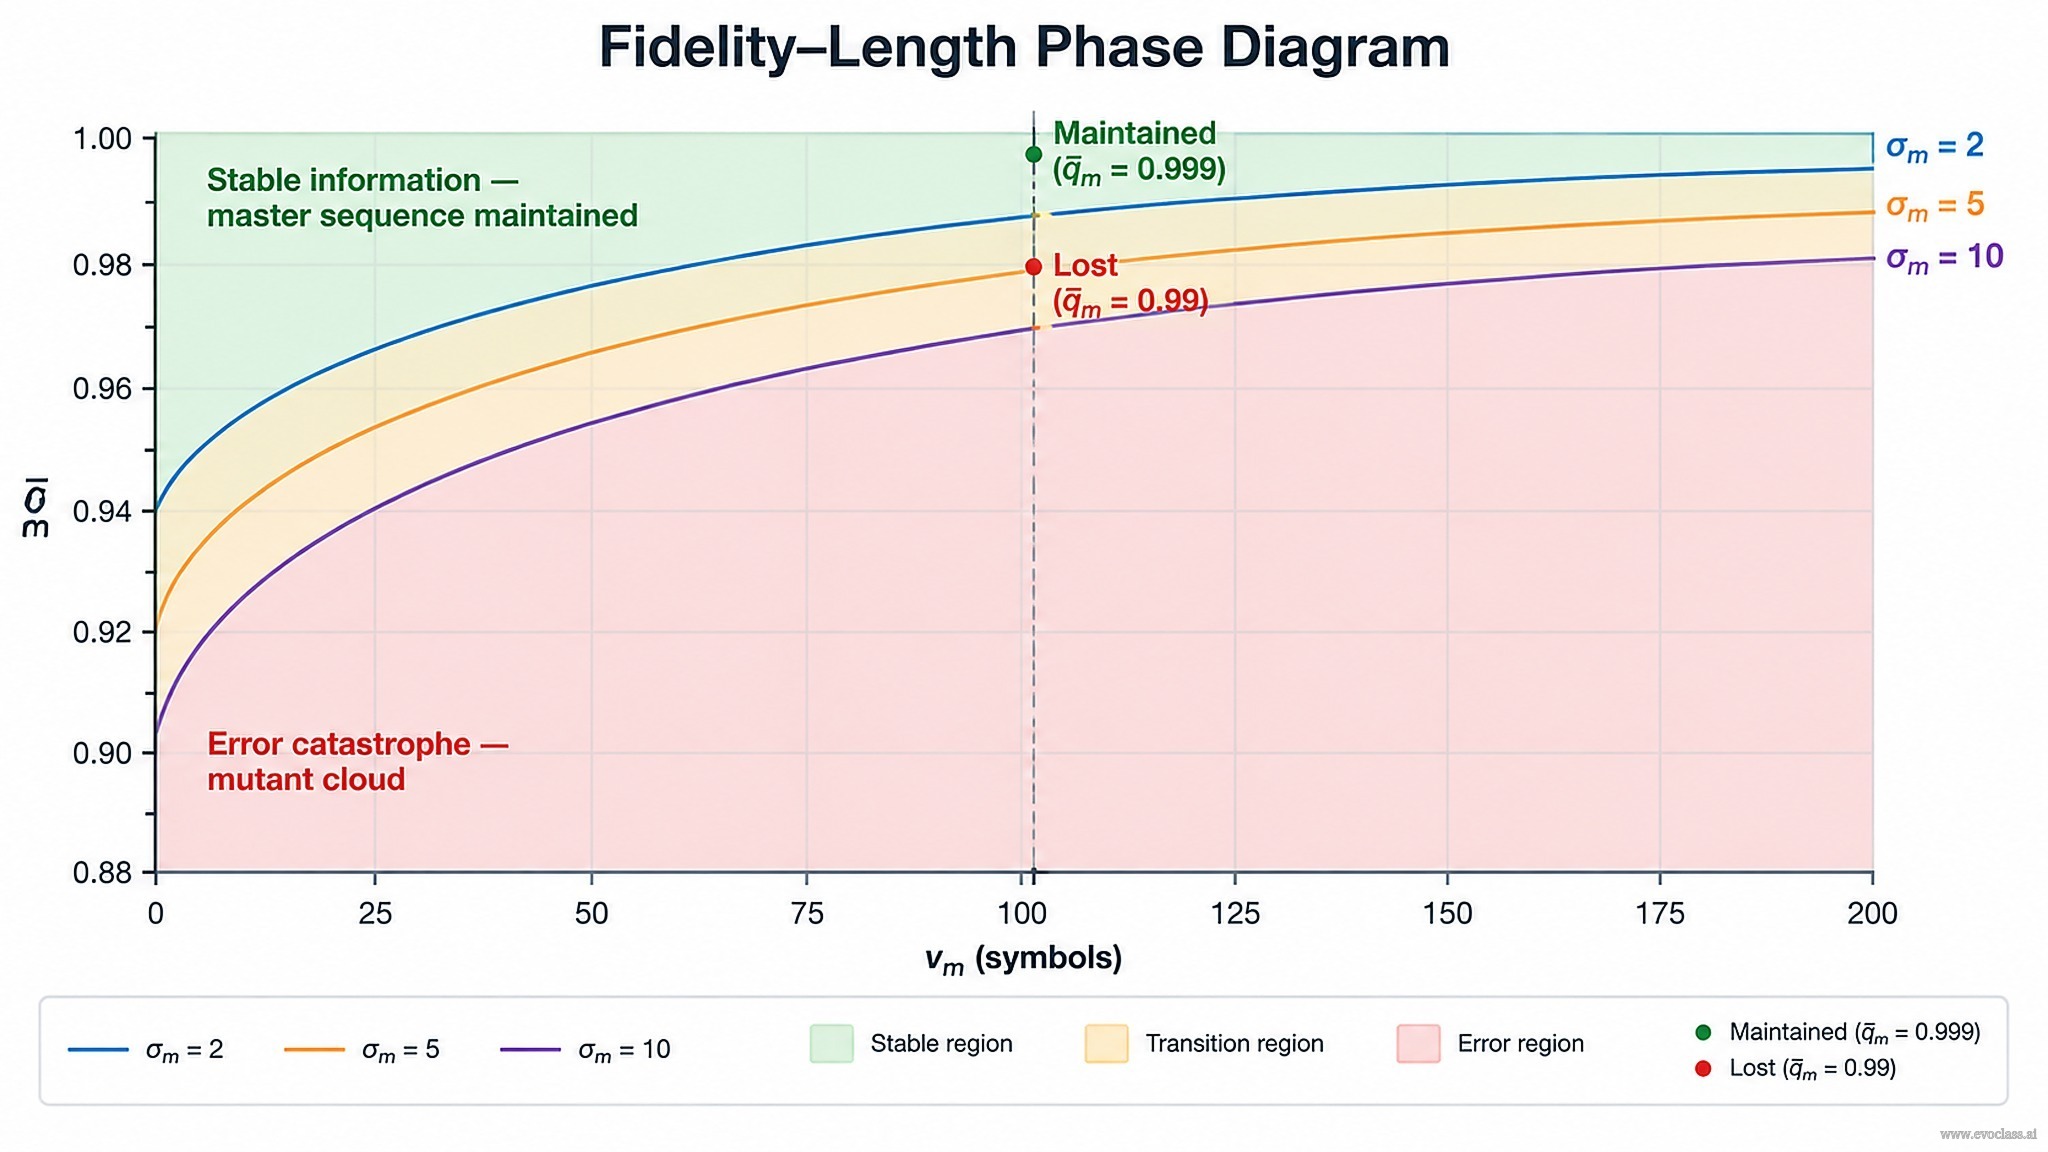
Riordinata, la soglia si legge q̄ₘ > σₘ−1/vₘ. Fedeltà, lunghezza e vantaggio selettivo sono quindi congiuntamente decisivi: nessuno di essi può essere scelto indipendentemente dagli altri due.
- Fedeltà media q̄ₘ — la probabilità media di copiare correttamente un simbolo.
- Lunghezza della sequenza vₘ — il numero di simboli che devono essere tutti copiati correttamente.
- Vantaggio selettivo σₘ — quanto più velocemente la sequenza master si replica rispetto al membro medio della sua nube di mutanti.
Sopra e sotto la soglia
Al di sopra della soglia, la selezione localizza la popolazione attorno alla sequenza significativa: si mantiene un picco stabile di quasi-specie e la maggior parte degli individui discende ancora dalla sequenza master. Al di sotto della soglia, la sequenza master non può essere distinta dai suoi mutanti; la popolazione si delocalizza in un'ampia distribuzione di mutanti e l'informazione codificata va perduta: la catastrofe d'errore.
La transizione è simile a una transizione di fase. Separa uno stato ordinato, portatore di informazione, da una nube disordinata di mutanti, anziché descrivere un declino graduale.
Perché lunghezza e vantaggio si compensano
Poiché q̄ₘvₘ è esponenziale in vₘ, sequenze più lunghe richiedono una fedeltà esponenzialmente superiore. Un σₘ maggiore permette invece una vₘ più lunga o una q̄ₘ inferiore. Questo compromesso vincola la lunghezza dei primi replicatori: con una fedeltà prebiotica realistica, si potevano mantenere solo sequenze brevi, il che motiva un'organizzazione di livello superiore come gli ipercicli, in cui diversi replicatori brevi sono collegati in una rete selezionata congiuntamente.
Esempio svolto
Prendiamo vₘ = 100 e σₘ = 2. Con q̄ₘ = 0,99, q̄ₘvₘ ≈ 0,366 e σₘ · q̄ₘvₘ ≈
Ipotesi e limiti
La soglia classica presuppone popolazioni numerose, organizzazione costante e un paesaggio di fitness a picco singolo. Popolazioni finite, neutralità, mutazioni compensatorie e paesaggi accidentati sfumano la transizione ma non eliminano il vincolo di fondo.
Diagramma di fase fedeltà–lunghezzaCurve di soglia q̄ₘ = σₘ^(−1/vₘ) per σₘ = 2, 5 e 10 tracciate in funzione della lunghezza della sequenza vₘ. Al di sopra di una curva, la selezione localizza la popolazione sulla sequenza master; al di sotto, la popolazione si delocalizza in un'ampia nube di mutanti. Un σₘ maggiore abbassa la fedeltà necessaria a una data lunghezza, e i due punti contrassegnati a vₘ = 100 mostrano come il passaggio di q̄ₘ da 0,99 (perduta) a 0,999 (mantenuta) attraversi il confine.